Investigación
VISIÓN DEL AUTOR
Cuidado con el déficit de complemento en cepas de ratones
¹ CINBIO, Universidade de Vigo, Campus Universitario de Vigo, 36310, Vigo, Pontevedra, España. ² Instituto de Investigación Sanitaria Galicia Sur (IIS-GS), Hospital Álvaro Cunqueiro, Estrada Clara Campoamor, 36312, Vigo, Pontevedra, España.
Correspondencia: África González-Fernández (africa@uvigo.es)
En Inmunología se emplean muy habitualmente ratones para experimentos in vivo, y la cepa a escoger es muy importante. Solemos emplear aquella con la que tenemos previa experiencia o la tienen nuestros colaboradores, o aquellas cepas que aparecen en diversas revistas científicas. Pero, ¿quién se para a pensar si la cepa de ratón escogida es la más adecuada para el experimento que se quiere estudiar? Por ejemplo, varias cepas de ratones no expresan el factor de complemento C5, lo que podría poner en entredicho, si no lo tenemos en cuenta, los resultados obtenidos con estas cepas.
El sistema del complemento es un componente crucial de la inmunidad innata y desempeña un papel esencial en la defensa del organismo frente a patógenos y en el mantenimiento de la homeostasis. Esta compleja red de proteínas potencia la eliminación de microorganismos y células dañadas al aumentar la eficacia de anticuerpos y fagocitos, además de contribuir a la inflamación y al reclutamiento de leucocitos. Está constituido por más de 30 proteínas plasmáticas que circulan en forma inactiva y que, tras su activación, se ponen en marcha de manera secuencial, generando tres funciones principales¹:
- Opsonización: en particular, el factor C3b recubre a los patógenos, facilitando su reconocimiento e ingestión por los fagocitos.
- Inflamación: las anafilotoxinas (C3a, C4a y C5a) reclutan células inmunitarias (neutrófilos, eosinófilos y monocitos) hacia los lugares de infección o lesión, potenciando la inflamación. C5a, la más potente, también promueve la expresión de moléculas de adhesión en el endotelio, la contracción del músculo liso y el aumento de la permeabilidad vascular.
- Lisis celular: el Complejo de Ataque a Membrana (MAC) (factores C5b, C6, C7, C8 y C9) crea poros en las membranas de los patógenos, provocando su destrucción.
El sistema del complemento puede activarse a través de tres vías (revisado en ²):
- Vía clásica: se inicia por complejos antígeno-anticuerpo (IgM, IgG). Los anticuerpos unidos a una superficie microbiana permiten la unión del primer factor del complemento (C1q, C1r, C1s), iniciando una cascada que escinde C4, C2 y C3, y que finalmente genera C5b y conduce a la formación del MAC.
- Vía de las lectinas: se activa cuando la lectina de unión a manosa (MBL) reconoce carbohidratos en superficies microbianas. Es muy similar a la vía clásica, pero en lugar de la unión de anticuerpos, la MBL se une directamente a los patógenos para iniciar la cascada, que luego progresa de forma idéntica.
- Vía alternativa: se activa espontáneamente sobre superficies extrañas. El factor C3b inicia la cascada junto con los factores B y D, que son estabilizados por la properdina. La vía alternativa también amplifica las otras vías.
Las tres vías convergen en la escisión de C3, formando la convertasa de C5, que escinde C5 en C5a y C5b. C5b impulsa el ensamblaje del MAC, mientras que C5a actúa como una potente anafilotoxina y agente quimioatrayente.
Un problema importante, pero a menudo infravalorado, en la investigación basada en ratón es la prevalencia de una deficiencia genética del quinto componente (C5) del complemento. Esta mutación produce deficiencia de C5, interrumpiendo de forma efectiva la vía terminal de activación del complemento.
La deficiencia de C5 en ratones con un defecto hereditario del complemento se identificó hace décadas. En 1964, Cinader B et al., en Canadá, identificaron el antígeno MuB1 en ratones, y vincularon su función con la actividad hemolítica del complemento³. Tras analizar 99 cepas y subcepas endogámicas de ratón, observaron que 39% de ellas no expresaba el antígeno MuB1. De forma interesante, varias cepas de uso común, incluidas A/HeJ, AKR/J, DBA/2J, NZB/B1NJ, SWR/J y B10.D2/oSnJ (línea antigua), portaban este defecto genético. Entre 14 subcepas de DBA analizadas, el 48% no expresaba MuB1. Los investigadores propusieron que esta deficiencia se debía a una mutación genética.
Tres años más tarde⁴, Nilsson UR y Müller-Eberhard, HJ demostraron que la proteína MuB1 era el equivalente funcional murino del factor C5 del complemento humano. Ooi y Colten (1979) comunicaron que la deficiencia de C5 en estas cepas se debe a un defecto en la forma secretada de la proteína C5, mientras que la biosíntesis de su precursor (pro-C5) permanece intacta⁵. Años después, en 1990, Wetsel et al.⁶ demostraron que estos ratones deficientes en C5 compartían una deleción idéntica de dos pares de bases en un exón del gen C5 (Hc0). De hecho, se encontró que la cepa B10-D2-Hc0 portaba el alelo Hcº heredado de ratones DBA/2J deficientes en C5. Cabe destacar que, en el mismo estudio⁶, no se halló esta deleción en las cepas Balb/CJ, C57Bl/6J, DBA/1J y B10.D2/nSnJ (línea nueva).
En 2016, la secuenciación profunda del genoma confirmó una deleción en la posición 35.043.207 del cromosoma 2, que conduce a un codón de parada prematuro en algunas de las cepas estudiadas, incluidas I/LnJ, KK/HiJ, MOLF/EiJ, NZB/B1NJ, RF/J y ST/bJ⁷. Como consecuencia de la deleción génica, los macrófagos de ratones portadores del alelo Hcº no secretan C5 funcional.
Tabla 1. Cepas de ratones con C5 suficiente y deficiente
| C5 suficiente (C5+/+) (sin deleción Hc0) Secretan C5 | C5 deficiente (C5-/-) (Hc0/Hc0) No secretan C5 funcional |
|---|---|
| BALB/c | A/HeJ |
| BALB/cJ | A/J |
| B10.BY | AKR/J |
| B10.D2/nSnJ (new line) | B10.D2/oSnJ (old line) |
| B10.LP | C57BL/6 (cepa modificada C5-/-) |
| C57BL/6 (C5+/+) | DBA/2J |
| C57BL/10 | I/LnJ |
| CH3 | FVB/NJ |
| DBA/1J | KK/HiJ |
| NSG-Hc¹ | MOLF/EiJ |
| NOD.Cg-Prkdc^scid/J | |
| NOD/ShiLtJ | |
| NSG (NOD-scid IL2rγnull): | |
| NZB/B1NJ | |
| RF/J | |
| ST/bJ | |
| SWR/J |
Aunque la deficiencia del complemento en varias cepas de ratón se descubrió hace años, parece que no ha recibido la atención que merece por parte de la comunidad inmunológica. El hallazgo de una mutación frecuente en el componente C5 del complemento en diversas cepas podría suscitar dudas sobre la validez de numerosos estudios inmunológicos, incluidos los de enfermedades infecciosas, inflamación, trastornos autoinmunes y cáncer. Las implicaciones de la deficiencia de C5 son significativas⁸˒⁹˒¹⁰ y podrían comprometer estudios que no tuvieron en cuenta esta variación genética. Las áreas de investigación especialmente afectadas podrían incluir:
- Estudios de enfermedades infecciosas: C5 desempeña un papel crucial en la eliminación de patógenos, especialmente frente a bacterias extracelulares y otros patógenos, así como en la quimiotaxis y activación de neutrófilos. Se ha demostrado que las cepas portadoras de la mutación Hc0 son más susceptibles a infecciones, incluyendo Aspergillus¹¹, Candida albicans¹², Mycobacterium tuberculosis¹³, Staphylococcus aureus¹⁴, Cryptococcus neoformans¹⁵ o Listeria monocytogenes¹⁶, entre otras. Los estudios que usan cepas deficientes en C5 pueden infravalorar el papel del complemento en la defensa del huésped o malinterpretar la eficacia de tratamientos. En algunos casos, mecanismos inmunitarios alternativos podrían compensar parcialmente la deficiencia de C5, dando lugar a resultados inesperados de resistencia a patógenos⁷.
- Investigación en cáncer: la activación del complemento influye tanto en la progresión tumoral como en la inmunovigilancia. Utilizar ratones deficientes en C5 puede conducir a conclusiones erróneas sobre el papel del complemento en la biología del cáncer y sobre la eficacia de inmunoterapias. Por ejemplo, la cepa Fvb (FVB/NJ) es altamente susceptible a tumores mamarios, mientras que la cepa C57BL/6J muestra mayor resistencia a tumores mamarios inducidos por inflamación¹⁷.
- Alergia y respuestas inflamatorias: C5 tiene un efecto inesperado en la respuesta alérgica respiratoria, con un papel protector que suprime la respuesta inflamatoria. Así, los ratones deficientes en C5 presentan respuestas alérgicas pulmonares exacerbadas¹⁸.
- Modelos de enfermedad autoinmune: C5 es crucial en la patogénesis de diversas condiciones autoinmunes. Los estudios con cepas deficientes en C5 pueden no reproducir con precisión las enfermedades autoinmunes humanas ni evaluar adecuadamente terapias potenciales. Los ratones deficientes en C5 son altamente resistentes a la artritis inducida por colágeno (CIA), un modelo ampliamente usado para artritis reumatoide¹⁹. En la encefalomielitis autoinmune experimental (EAE), se ha observado un papel dual de C5: aumenta la desmielinización inflamatoria en la fase aguda, pero también promueve la remielinización durante la recuperación²⁰.
- Implicaciones más amplias: incluyen glaucoma (los ratones deficientes en C5 muestran mayor protección frente a glaucoma severo en comparación con ratones con C5 normal)²¹, trastornos neuropsiquiátricos (la deficiencia de C5 podría afectar a los estudios sobre aprendizaje, memoria y conductas sociales)²² o ictus (las diferencias entre cepas en la respuesta inmunitaria, incluida la activación del complemento, influyen en los resultados de investigaciones sobre ictus)²³, entre otros. Esto sugiere que el uso de cepas deficientes en C5 puede llevar a infravalorar el papel del complemento en otras patologías.
- Más allá de C5: otros componentes del complemento (p. ej., C3, C4, C9, factor B, factor D) también pueden estar alterados en ciertas cepas. En 1995, Frank MM destacó la importancia de los modelos animales para deficiencias del complemento²⁴, pero desde entonces han surgido muchos más modelos. Los investigadores deben evaluar cuidadosamente y ser conscientes de la deficiencia del complemento en los modelos experimentales que desean usar. Por ejemplo, los ratones deficientes en C3 muestran mayor neovascularización en un modelo de retinopatía del prematuro (revisado en ²⁵), pero podrían ofrecer protección frente a algunos trastornos neurológicos²⁶.
El sistema del complemento es un componente esencial de la inmunidad innata, con un papel clave en la defensa del huésped, la inflamación y la homeostasis tisular, además de ayudar a la inmunidad adaptativa. El descubrimiento de la mutación frecuente de C5 en cepas de ratón pone de manifiesto un problema crítico en la investigación biomédica. Las cepas portadoras de la mutación de C5 siguen utilizándose ampliamente en investigación en Inmunología. Por ejemplo, la cepa FVB/NJ es deficiente en C5, pero se emplea todavía de forma habitual en la producción de ratones transgénicos por dos características clave: los pronúcleos prominentes en sus ovocitos fecundados y su gran tamaño de camada⁹. Otras cepas deficientes en C5 también se utilizan en diversos campos¹⁰, incluyendo investigación en cáncer (p. ej., A/J, A/HeJ, AKR/J, RF/J y SWR/J), autoinmunidad (NZB/B1NJ), estudios de infección (p. ej., I/LnJ y MOLF/EiJ) y otras áreas como investigación cardiovascular e inflamación (B10.D2/oSnJ), neurobiología (p. ej., DBA/2J) y trastornos metabólicos (KK/HiJ).
De cara al futuro, los investigadores deben ser conscientes del estado de C5 de sus modelos murinos, así como de posibles deficiencias en otros componentes del complemento, y valorar cómo estos factores pueden influir en sus resultados y conclusiones según el área de estudio.
Para garantizar la validez y la capacidad de traslación de los estudios en ratón, considero que debería tenerse en cuenta lo siguiente:
- Los investigadores deberían verificar e informar el estado de C5 de las cepas de ratón utilizadas en sus estudios. También debería indicarse la ausencia de otros factores del complemento. Es importante revisar las fichas técnicas de los modelos murinos que se van a comprar o emplear, teniendo en cuenta la situación del C5 y otros factores del complemento.
- Estudios comparativos entre cepas con C5 normal y deficiente podrían aclarar el impacto real del complemento en diversos procesos biológicos. Por ejemplo, las cepas de tipo salvaje C57BL/6 (C5+/+) y la C57BL/6 (C5-/-) proporcionan un modelo valioso para este tipo de estudios²⁷.
- La comunidad científica debería reevaluar críticamente hallazgos previos que pudieran haber estado influenciados inadvertidamente por deficiencias del complemento.
Al abordar esta omisión, podremos mejorar la fiabilidad de los modelos murinos en inmunología, enfermedades infecciosas, autoinmunidad e investigación en cáncer, y asegurar que los hallazgos sean más precisos y trasladables a la salud humana.
Un resumen de este texto fue publicado en European Journal of Immunology 55 (3) e202451678 (2025). https://doi.org/10.1002/eji.202451678
Visión de las autoras
- Janeway CA Jr, Travers P, Walport M, Shlomchik MJ. Immunobiology: the immune system in health and disease. 6th edition. (New York: Garland Publishing, 2005).
- Dunkelberger J, Song WC. Cell Res 20, 34-50 (2010).
- Cinader B, Dubiski, S, Wardlaw AC. J Exp Med 120 (5), 897-924 (1964).
- Nilsson UR, Müller-Eberhard, HJ. J Exp Med 125 (1), 1-16 (1967).
- Ooi YM, Colten, HR. Nature 282, 207-208 (1979).
- Wetsel RA, Fleischer DT, Haviland DL. J Biol Chem 265(5), 2435-2440 (1990).
- Doran AG, Wong K, Flint, J. et al. Genome Biol 17(167), 1-16 (2016).
- Sellers RS, Clifford CB, Treuting PM, Brayton C. Veterinary pathology 49(1), 32-43 (2012).
- Sellers RS. Toxicologic pathology 45(1),134-145 (2017).
- Konopko, A., Łukomska, A., Kucia, M. et al. Stem Cell Rev and Rep 21, 59–67 (2025).
- Svirshchevskaya EV, Shevchenko MA, Huet D, et al. Int J Immunogenet 36(5),289-299 (2009).
- Radovanovic I, Mullick A, Gros P. PLoS One 6: e18957 (2011).
- Veazey RS, Horohov DW, Krahenbuhl JL, et al. Vet Microbiol 47(1-2), 79–87 (1995).
- Cerquetti MC, Sordelli DO, Ortegon RA, Bellanti JA. Infect Immun 41(3), 1071–1076 (1983).
- Rhodes JC, Wicker LS, Urba WJ. Infect Immun 29(2), 494–499 (1980).
- Gervais F, Desforges C, Skamene E. J Immunol 142(6), 2057-2060 (1989).
- Davie SA, Maglione JE, Manner CK, Young D, Cardiff RD, MacLeod CL, Ellies LG. Transgenic Res 16(2),193–201 (2007).
- Drouin SM, Sinha M, Sfyroera G, Lambris JD, Wetsel RA. Am J Respir Crit Care Med 173(8), 852-857 (2006).
- Wang Y, Kristan J, Hao L, Lenkoski CS, Shen Y, Matis LA. J Immunol 164(8), 4340-4347 (2000).
- Weerth SH, Rus H, Shin ML, Raine CS. Am J Pathology 163(3), 1069-1080 (2003).
- Soto I, Howell GR. Cold Spring Harb Perspect Med. 4(8),a017269 (2014).
- Võikar V, Kõks S, Vasar E, Rauvala H, Physiol Behav 72(1-2), 271-281(2001).
- Becker KJ. Transl Stroke Res 7(4), 303-312 (2016).
- Frank MM. J Clin Immunol 15, S113-S121 (1995).
- Wilke GA, Apte RS. J Clin Invest 134(9), e178296 (2024).
- Schartz ND, Aroor A, Li Y, Pinzón-Hoyos N, Brewster AL. Front Mol Neurosci 16, 1265944 (2023).
- de Castro IA, Bavia L, Fraga TR, Amano MT et al. Front Cell Infect Microbiol 8, 63 (2018).
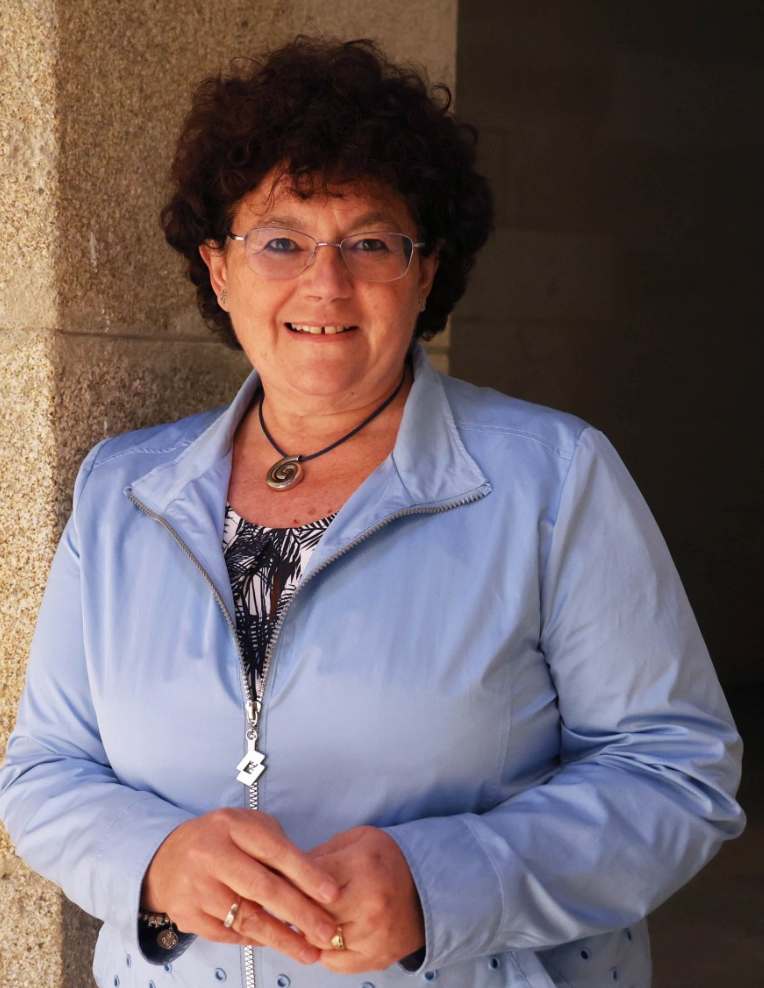
Hoy nos entrevistamos con la Dra. África González Fernández, Catedrática de Inmunología en la Universidad de Vigo, Investigadora y académica de la Real Academia de Farmacia de Galicia.
África ha desarrollado una larga y fructífera carrera científica, además de trasmitir todo este conocimiento a través de sus clases, los curos de verano, y una intensa labor divulgadora. Con motivo de una reciente incursión en revisar aspectos moleculares del sistema de complemento en modelos animales, que se puede consultar en este número de la Sección de Investigación (Cuidado con el déficit de complemento en cepas de ratones), queremos saber un poco más sobre este interés.
¿Por qué te ha parecido relevante observar atentamente al complemento?
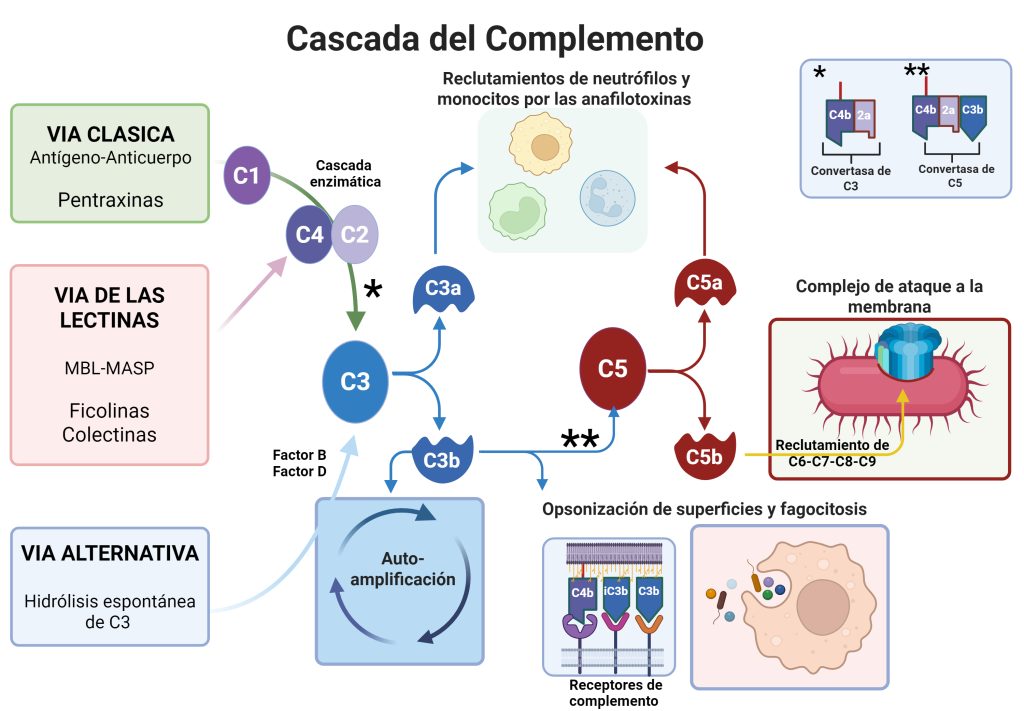
El complemento es un sistema muy relevante para la conexión que existe entre el sistema inmunitario innato y el específico; presenta una actividad anti-bacteriana muy potente, y aunque su ayuda a la acción de los anticuerpos se ha estudiado mucho, es probablemente su papel en la vigilancia constante y el control interno el que hace una labor silenciosa pero permanente. Esto sucede a través de pentraxinas, ficolinas y colectinas, y otros componentes solubles, que conforman modos de activar el sistema y actúan como primera línea de defensa. Los componentes mencionados influyen en la vía clásica (pentraxinas), de las lectinas (ficolinas y colectinas); nos queda la vía alternativa, que afectaría directamente a la convertasa C3 y que se activa mayoritariamente por componentes de la superficie de patógenos (ver modelo en la figura).
En el caso de los modelos animales, es un sistema que no se tiene muy en cuenta en distintas cepas de ratón, por ejemplo. Y me dije: ¿no tienen complemento? No puede ser. Y me puse a estudiarlo más en profundidad. Y pude comprobar que hay muchos sistemas en los que puede estar actuando, y no tenerlo en cuenta puede implicar perder la visión de conjunto y llegar a conclusiones inexactas.
Un ejemplo, el 40% de las cepas que se usan en investigacón tienen fallos en C5, lo cual indica que no pueden armar el complejo de ataque a membrana. Creo que esto es importante, y se debe tener en cuenta a la hora de diseñar los estudios, y analizar los resultados.
El 40% de las cepas de ratón que se usan en investigación tiene fallos en C5, lo cual indica que no pueden armar el complejo de ataque a membrana
¿Cómo se ha llegado hasta aquí?
En el caso del complemento, como en otros escenarios, el tener una visión histórica es relevante. En los inicios, se observó que los sueros de animales inmunizados con bacterias presentaban una funcionalidad o capacidad antibacteriana por los anticuerpos desarrollados en el suero, pero necesitaban algo más que era lábil al calor, y se perdía al calentar el suero. Dado que complementaba la acción de los anticuerpos, se le denominó complemento. Esto llevó a una investigación más profunda, descubriendo que el complemento era en realidad un sistema de activación en cascada con muchos componentes, y otros muchos que lo regulan. De hecho, está muy regulado, porque su activación descontrolada puede ser muy lesiva.
¿Tenemos claro cómo funciona el sistema del complemento?
El del complemento es un sistema complejo que puede actuar a varios niveles, y por ello es relevante conocerlo bien y saber qué implicaciones puede tener, como por ejemplo en los modelos animales, que es lo que nos trae hoy aquí. A mis alumnos también se lo intento trasmitir en las clases en la Universidad, o en el curso de verano en la Universidad Menéndez Pelayo. Aquí profundizo mucho, porque se podría decir que es un “elemento olvidado”.
El papel del complemento es importante porque…
Tenemos 3 rutas de activación: clásica, lectinas y alternativa (en realidad esta amplifica a las anteriores), que se ponen en marcha tras la rotura de diversos componentes, hasta llegar a un elemento común, el C3, y posteriormente continuar para poder formar el complejo de ataque a membrana (CAM), que es la parte en que se pueden lisar células, bacterias, etc.
Nuestras células tienen factores especie específicos que impiden a distintos niveles a los factores del complemento. Esta regulación es muy redundante, lo que evita que algunas variantes genéticas hagan que falle por completo. Aun así, se dan enfermedades por déficit en estas proteínas, como en el caso de defectos en C1, que se asocia con el desarrollo autoinmunidad (Lupus eritematoso sistémico).
Por supuesto, también pueden producirse reacciones adversas si no se eliminan rápidamente los restos celulares derivados de esta activación del sistema del complemento, que debe ser rápida. Los primeros en acudir son los macrófagos. Pero si lo hacen de forma lenta, pueden acudir las células dendríticas, y en ese momento, se pueden activar y presentar antígenos de estos restos celulares, que puede estar también en la base de algunas enfermedades autoinmunes mediadas por inmunocomplejos.
El del complemento es un sistema complejo que puede actuar a varios niveles
¿Cómo compaginar docencia e investigación?
La docencia es muy exigente y puede considerarse que impone una limitación por la dedicación que requiere, y los horarios, que no son absolutamente flexibles. Tanto las clases como ocuparse de los alumnos requiere planificación.
A mí me gusta la docencia, y lo trabajo mucho. No se trata solo de la dedicación a una asignatura concreta o el temario, sino organizar clases, los trabajos de alumnos, las prácticas, las tutorías. Con este sistema se permite trasmitir la información a los alumnos, que es muy relevante.
Los alumnos son los futuros investigadores, y es importante que reciban de forma correcta los conceptos, no solo en Inmunología, sino en todos los campos del saber. Para el alumno es relevante darle el contexto del conjunto, para poder entrar después al detalle, y profundizar en conceptos más concretos. Por eso a mí me gusta dar primero una visión general y sencilla, y a partir de ahí componer el escenario más complejo.
Los profesores que nos dedicamos a la investigación la realizamos de forma complementaria a la investigación, habitualmente. Esto también es relevante para los alumnos, porque están en contacto con los expertos que generan el conocimiento que reciben en el aula.
Los alumnos son los futuros investigadores,
y es importante que reciban de forma correcta los conceptos
Además, te aventuraste en el mundo de la empresa…
Sí, participar en la fundación de Nanoinmunotech ha sido una actividad muy gratificante, porque se partió de descubrimientos del laboratorio, hicimos una Spin-off y se mantuvo la actividad desde el 2009 hasta el 2024. Durante este tiempo, nos dedicamos a los nanomateriales, en particular a nanopartículas, facilitando su caracterización biológica y la interacción con el sistema inmunitario. La cartera de servicios incluía estudios de hemolisis, internalización y la activación del complemento, por supuesto.
Durante todo este periodo, tuvimos una buena producción, y se mantuvo una plantilla de aproximadamente 20 personas con un nivel muy alto de cualificación, que han podido usar la empresa como una plataforma relevante para su proyección profesional.
¿Cómo ves el panorama en el campo de las nanopartículas?
Pues yo pienso que, de forma conceptual, la innovación se ha frenado un poco, porque se ha hecho mucho trabajo previo en ello, y ahora la mayor dedicación es a las aplicaciones que puedan tener. Y en este campo, creo que habrá muchos avances, porque se van a poder usar en campos muy diversos, para el “delivery”, que es algo que se ha usado mucho con los liposomas y las partículas de albúmina en formato nanoparticulado. Ahora, este tipo de farmacología puede ayudar a terapias anti-tumorales, o a potenciar el efecto de los CAR-T, por ejemplo. La gran ventaja es siempre que se pueden inocular y dirigirse a células específicas mediante su “decoración” externa con elementos de interés, como anticuerpos o ligandos para receptores específicos.
Además, el uso de nanopartículas de oro está muy extendido ahora para los kits rápidos de detección, por ejemplo, en el caso de drogas, o en las pruebas de embarazo, que antes usaban partículas de látex y se veía una “rayita azul”, y ahora se usan de oro, y la “rayita es roja”.
El uso de nanopartículas sobre todo las no biodegradables para la práctica clínica siempre deberá tener en cuenta su posible depósito en el organismo (hígado, bazo, u otras localizaciones) y su capacidad de afectar al riñón, por el colapso de glomérulos, que es parte de efectos secundarios ya conocidos. Por supuesto, hay otras nanopartículas de distinta composición, que son las que se están ensayando más intensamente ahora.
Desde luego, las nanopartículas tienen muchas ventajas, y se seguirán usando en distintas aplicaciones. Un ejemplo claro lo tenemos con las vacunas del COVID que emplean nanopartículas lipídicas y que son la base de futuras vacunas para distintas patologías (infecciosas, tumorales, etc.).
Volumen 45 | Núm. 2